
大家好,这里是专注表观组学十余年,领跑多组学科研服务的易基因。
高温(Heat stress,HS)是严重制约作物产量的主要非生物胁迫。解析高温响应的调控通路对于培育产量稳定的高温抗性作物至关重要。尽管表观基因组调控和表观转录组调控均参与植物的高温适应过程,但两者的互作机制尚未完全阐明。2026年8月20日,中国农业大学农学院小麦研究中心孙其信院士团队刘德彪博士等为第一作者,胡兆荣教授为通讯作者,在《Nature Communications》期刊发表题为“Epigenetic-epitranscriptomic crosstalk through TaHAG1-TaNSUN2 coordinates thermotolerance in wheat”的高水平科研成果,揭示了小麦高温胁迫响应调控过程中表观基因组修饰(组蛋白乙酰转移酶TaHAG1)与表观转录组修饰(RNA m5C甲基转移酶TaNSUN2)协同调控的分子机制。易基因科技RNA亚硫酸盐测序(RNA-Bis)技术精准绘制m5C修饰图谱,助力揭示小麦高温适应及高产育种的表观转录组调控机制。
标题:Epigenetic-epitranscriptomic crosstalk through TaHAG1-TaNSUN2 coordinates thermotolerance in wheat(TaHAG1-TaNSUN2介导的表观基因组-表观转录组互作协同调控小麦高温抗性)
发表时间:2026年8月20日
发表期刊:Nature Communications
影响因子:IF18.1/Q1
技术平台:CUT&Tag、RNA-Bis、m5C-RIP-seq、RNA-seq(易基因金牌技术)
作者单位:中国农业大学
DOI:10.1038/s41467-026-76951-0
本研究以小麦(Triticum aestivum)为材料,通过整合表观基因组(CUT&Tag, H3K9Ac/H3K14Ac)、转录组(RNA-seq)、 表观转录组(RNA-Bis/m5C-RIP-seq)等多组学方法,鉴定出 mRNA m5C甲基转移酶 TaNSUN2 是小麦高温抗性的关键调控因子,并系统解析了组蛋白乙酰转移酶TaHAG1与TaNSUN2之间的调控轴。研究发现,TaHAG1通过在TaNSUN2启动子区和转录起始位点沉积H3K9Ac激活其转录,这一过程受转录因子TaE2F1和TaDP1协同招募,并与TaHAG1互作形成功能性复合体。
功能实验表明,TaNSUN2主要作用于TaHAG1下游,通过m5C mRNA 甲基化维持叶绿体组织相关转录本稳定性以增强高温抗性。田间试验进一步证实,TaNSUN2 过表达系在正常条件下表现出更高的籽粒产量,并在高温胁迫下减少产量损失。本研究结果阐明了组蛋白乙酰化与 RNA m5C甲基化协同作用的高温胁迫适应整合调控网络,为高温抗性小麦的分子育种提供潜在靶标。
研究方法
(1)表观基因组学:
CUT&Tag:绘制全基因组H3K9Ac和H3K14Ac图谱,定位TaHAG1依赖性染色质修饰位点。
ChIP-qPCR:验证蛋白与靶启动子互作。
(2)转录组学:
RNA-seq:比较野生型与Tahag1突变体在高温胁迫下的基因表达差异。
(3)表观转录组学:
RNA-Bis:野生型和Tansun2突变体在正常与高温胁迫(42℃,24h)条件下的叶片总RNA,全转录组单碱基分辨率鉴定m5C修饰位点,解析高温胁迫下mRNA m5C的分布图谱与动态变化。
m5C-RIP-seq:利用抗m5C抗体进行RNA免疫沉淀测序,筛选TaNSUN2依赖性m5C靶标转录本。
LC-MS/MS:定量检测mRNA的整体m5C修饰水平。
(4)分子互作验证:
酵母单杂交(Y1H)、酵母双杂交(Y2H)、双分子荧光互补(BiFC)、荧光素酶互补成像(LCI)、免疫共沉淀(Co-IP)、凝胶迁移实验(EMSA)等实验,解析TaHAG1-TaE2F1-TaDP1复合体组装机制。
(5)基因功能验证:
构建TaNSUN2、TaE2F1、TaDP1敲除突变体并构建过表达系,在苗期及田间灌浆期进行高温抗性表型鉴定。
结果图形
(1)多组学分析揭示TaHAG1介导的高温响应机制
研究团队首先证实,组蛋白乙酰转移酶TaHAG1在高温胁迫下快速且持续表达上调。通过Western blot和CUT&Tag技术分析其突变体,Tahag1突变体中H3K9ac水平在正常及高温胁迫条件下均显著降低,而H3K14ac仅在高温胁迫下部分降低。CUT&Tag全基因组分析显示,H3K9ac主要富集在启动子区域,其靶基因主要富集在应激响应、蛋白质稳态及信号通路;而H3K14ac的靶基因则与发育和分化过程相关。整合RNA-seq数据发现,在Tahag1突变体中下调基因与H3K9ac缺失基因显著重叠,表明TaHAG1通过H3K9ac直接调控高温响应基因。在这些受调控的基因中,研究团队重点关注TaNSUN2。
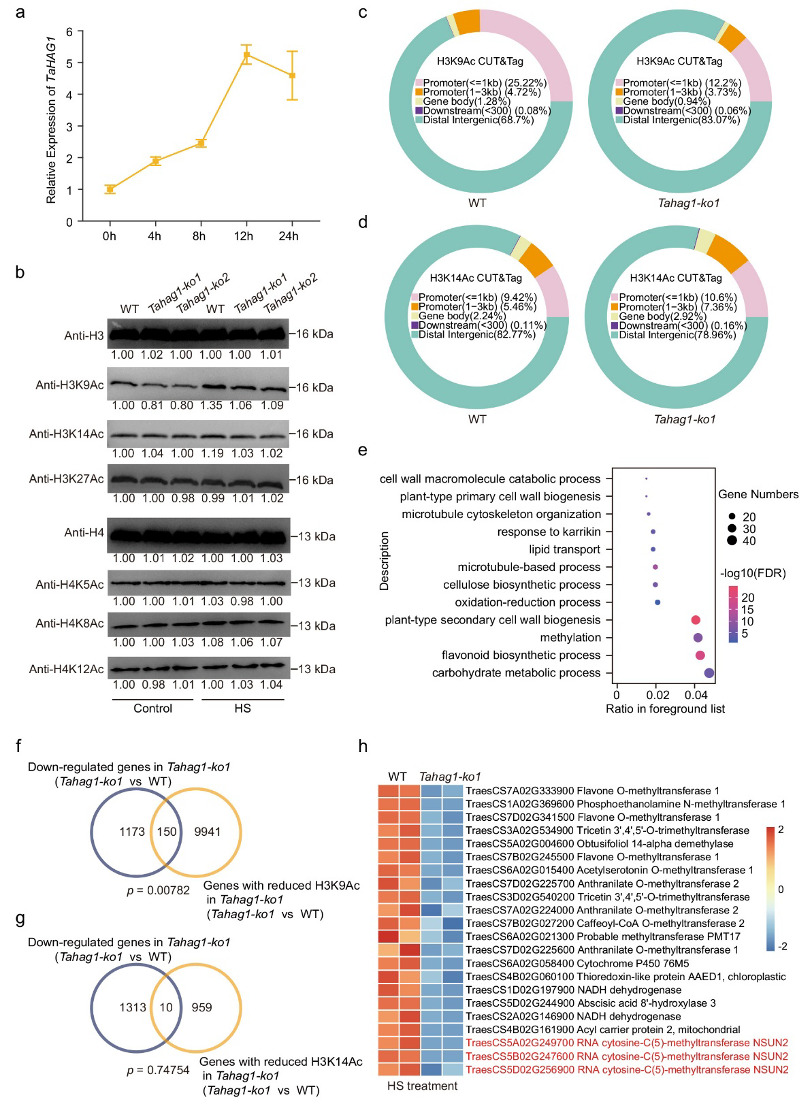
图1:TaHAG1在高温胁迫下的转录组与组蛋白乙酰化动态变化。
a. qRT-PCR检测高温胁迫下TaHAG1的表达水平。
b. 野生型和Tahag1-ko株系中H3K9Ac、H3K14Ac、H3K27Ac、H4K5Ac、H4K8Ac和H4K12Ac修饰的免疫印迹。
c-d. H3K9Ac和H3K14Ac CUT&Tag peaks在小麦基因组中的分布。
e. Tahag1-ko1中下调基因的GO分析。
f. Tahag1-ko1中H3K9Ac靶基因与下调基因之间的重叠维恩图。
g. Tahag1-ko1中H3K14Ac靶基因与下调基因之间的重叠维恩图。
h. 野生型和Tahag1-ko1中部分已鉴定下调基因归一化相对表达量热图。
(2)小麦高温抗性依赖m5C甲基转移酶TaNSUN2
整合染色质乙酰化组与转录组数据发现,Tahag1突变体中全基因组下调基因与H3K9ac降低基因存在显著重叠,其中TaNSUN2表达在高温胁迫下被显著抑制。Dot blot、LC-MS/MS和体外酶活实验揭示TaNSUN2是小麦高温抗性的正调控因子。
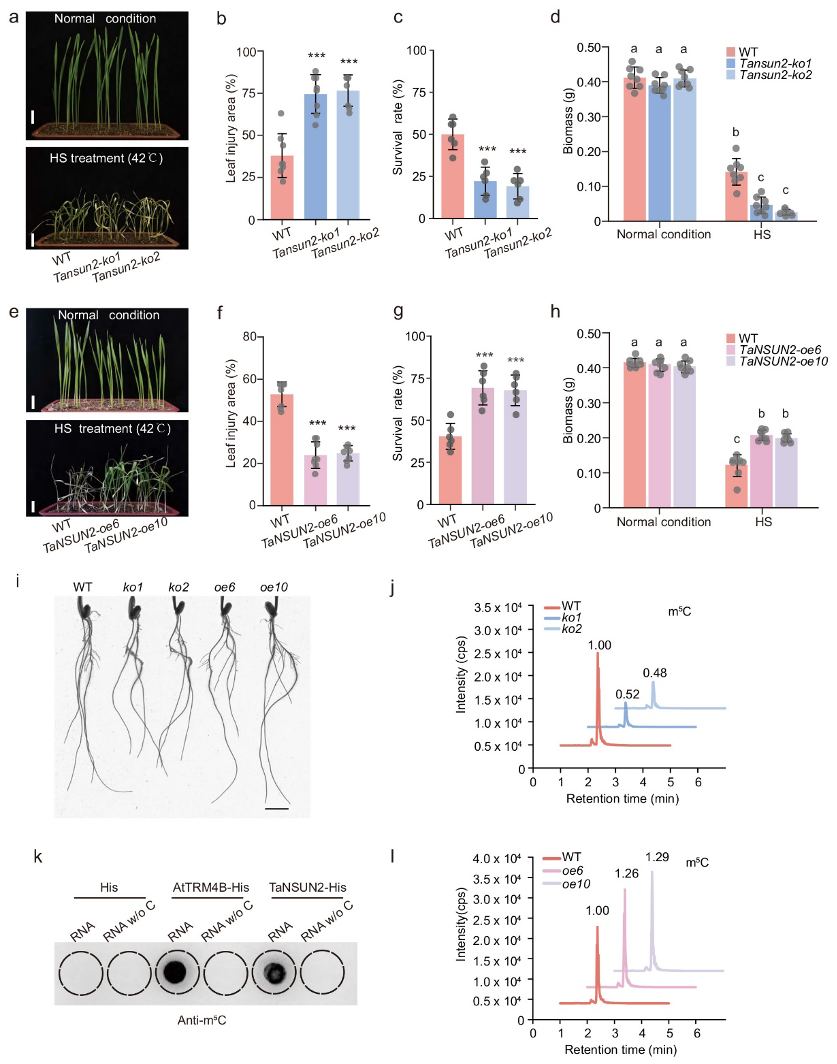
图2:TaNSUN2是小麦高温抗性的正调控因子。
a-h:野生型、Tansun2突变体(ko1和ko2)及TaNSUN2过表达(oe6和oe10)植株在高温胁迫下的表型比较(a,e)、叶片损伤面积率(b,f)、幼苗存活率(c,g)、生物量(d,h)。
i. TaNSUN2转基因小麦苗期根表型。
j,l. HPLC-MS/MS检测野生型、Tansun2突变体和TaNSUN2-OE植株的mRNA m5C修饰水平。
k. TaNSUN2-His的体外m5C甲基转移酶活性检测。
(3)TaHAG1通过与组蛋白乙酰化依赖性结合促进TaNSUN2表达
CUT&Tag数据显示,在Tahag1突变体中,TaNSUN2启动子区域的H3K9ac富集程度显著降低。ChIP-qPCR证实TaHAG1蛋白直接与TaNSUN2启动子区域结合。CUT&Tag-qPCR进一步表明H3K9ac在突变体中显著减少,而H3K14ac变化不大。双荧光素酶报告基因实验证明TaHAG1能激活TaNSUN2启动子转录活性。这些结果共同证明TaHAG1通过结合并沉积H3K9ac修饰,直接激活TaNSUN2转录。
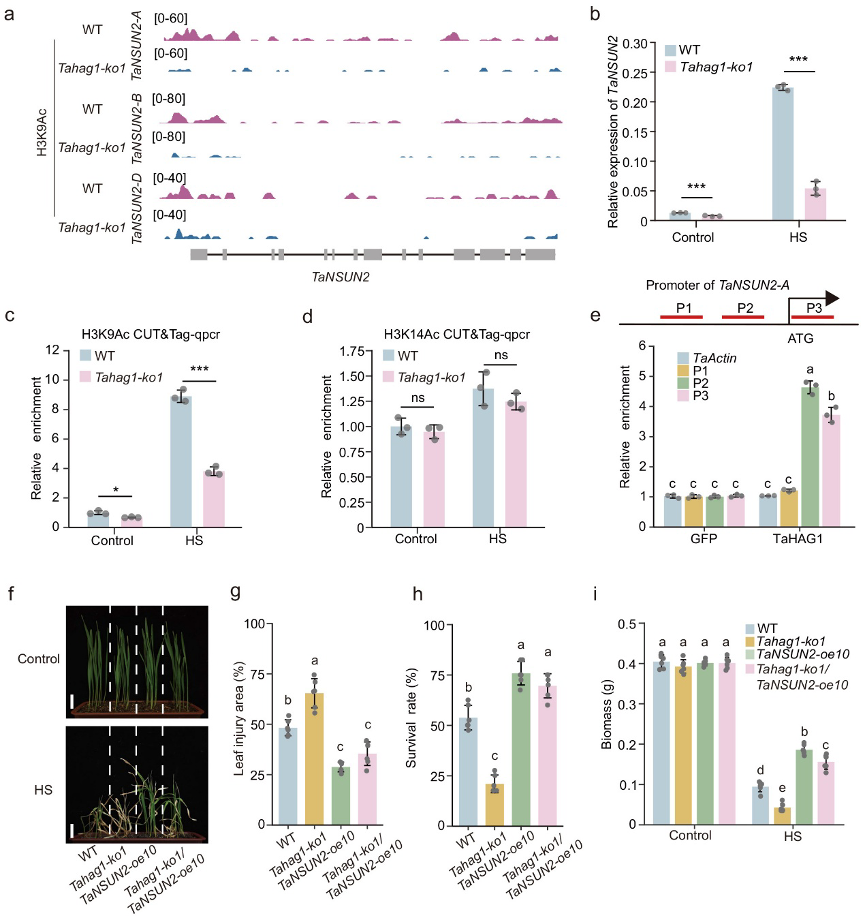
图3:TaHAG1通过依赖于组蛋白乙酰化结合以激活TaNSUN2表达。
(4)TaNSUN2受TaE2F1-TaDP1转录复合体协同调控,且TaHAG1、TaE2F1和TaDP1之间存在互作
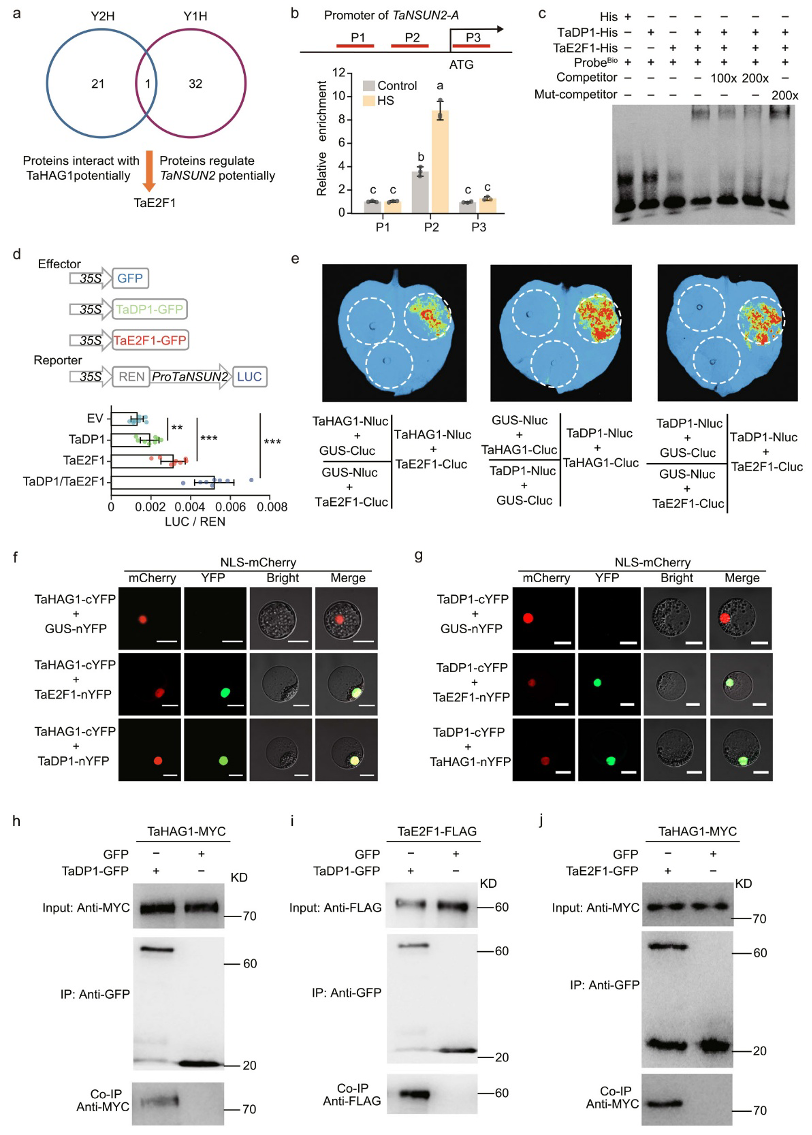
图4:TaHAG1、TaE2F1与TaDP1的互作。
a. Y1H和Y2H筛选的共同候选转录因子TaE2F1韦恩图。
b. ChIP-qPCR验证TaE2F1在TaNSUN2-A启动子上的结合位点。
c. EMSA实验表明,只有TaE2F1-TaDP1复合体能够结合TaNSUN2-A启动子。
d. 双荧光素酶报告基因实验显示TaE2F1和TaDP1反式激活TaNSUN2-A启动子活性。
e. LCI实验显示TaHAG1、TaE2F1与TaDP1之间的互作。
f-g. BiFC实验在小麦原生质体中证实TaHAG1、TaE2F1与TaDP1之间的互作。
h-j. Co-IP实验证明TaHAG1、TaE2F1与TaDP1之间的物理互作。
(5)TaE2F1和TaDP1的CRISPR敲除与过表达验证其在高温胁迫下的功能
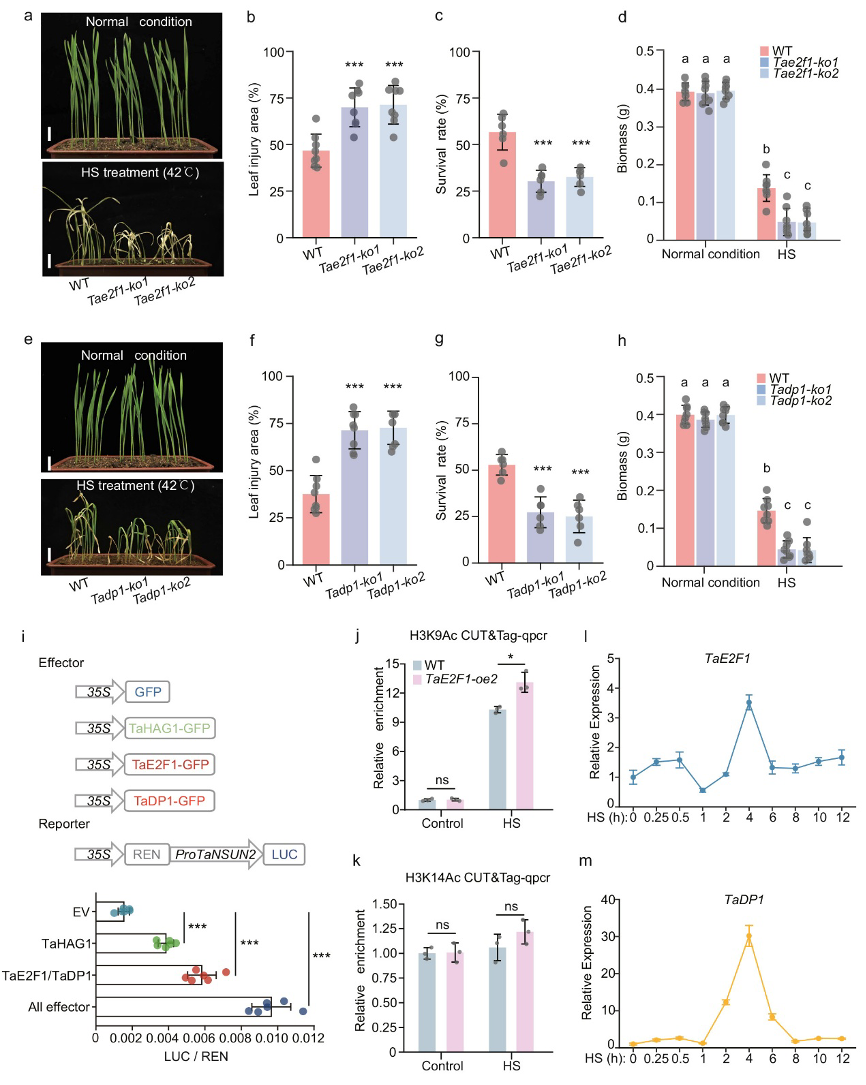
图5:TaE2F1和TaDP1正调控小麦高温抗性。
a-d. 野生型和Tae2f1突变体(ko1和ko2)在高温胁迫下的表型(a)、幼苗存活率(b)、叶片损伤面积率(c)和生物量(d)的比较分析。
e-h. 野生型和Tadp1突变体(ko1和ko2)在高温胁迫下的表型(e)、幼苗存活率(f)、叶片损伤面积率(g)和生物量(h)的比较分析。
i. TaHAG1、TaE2F1和TaDP1对TaNSUN2启动子的转录活性。
j-k.野生型和TaE2F1-oe2植株TaNSUN2位点H3K9Ac和H3K14Ac富集CUT&Tag-qPCR分析。
l-m. qRT-PCR检测高温胁迫下TaE2F1和TaDP1的表达水平。
(6)TaNSUN2介导的m5C甲基化对高温抗性的表观转录组调控
为探究TaNSUN2的下游靶标,研究团队利用RNA-Bis(RNA亚硫酸盐测序)技术绘制了野生型及Tansun2-ko1小麦叶片在正常和高温胁迫(42℃, 24h)下的m5C甲基化图谱,分别鉴定出85,043和102,309个高置信度m5C位点,Circos图动态展示高温胁迫诱导全转录组mRNA甲基化水平显著上升。m5C位点主要富集在CDS(编码区)的起始密码子和终止密码子区域,并鉴定出一个新的保守基序CGNCGSCG(N=A/T/C/G,S=G/C)。通过比较m5C-RIP-seq数据,发现TaNSUN2缺失导致转录本低甲基化,尤其在高温胁迫下。对这些低甲基化靶基因进行GO富集分析揭示低甲基化基因主要富集在mRNA结合、叶绿体组织和叶绿体包膜相关通路。RNA-seq数据鉴定出304个可能受TaNSUN2调控的候选基因,其中包含叶绿体生物发生相关蛋白、茉莉酸响应因子及过氧化物酶组分等。
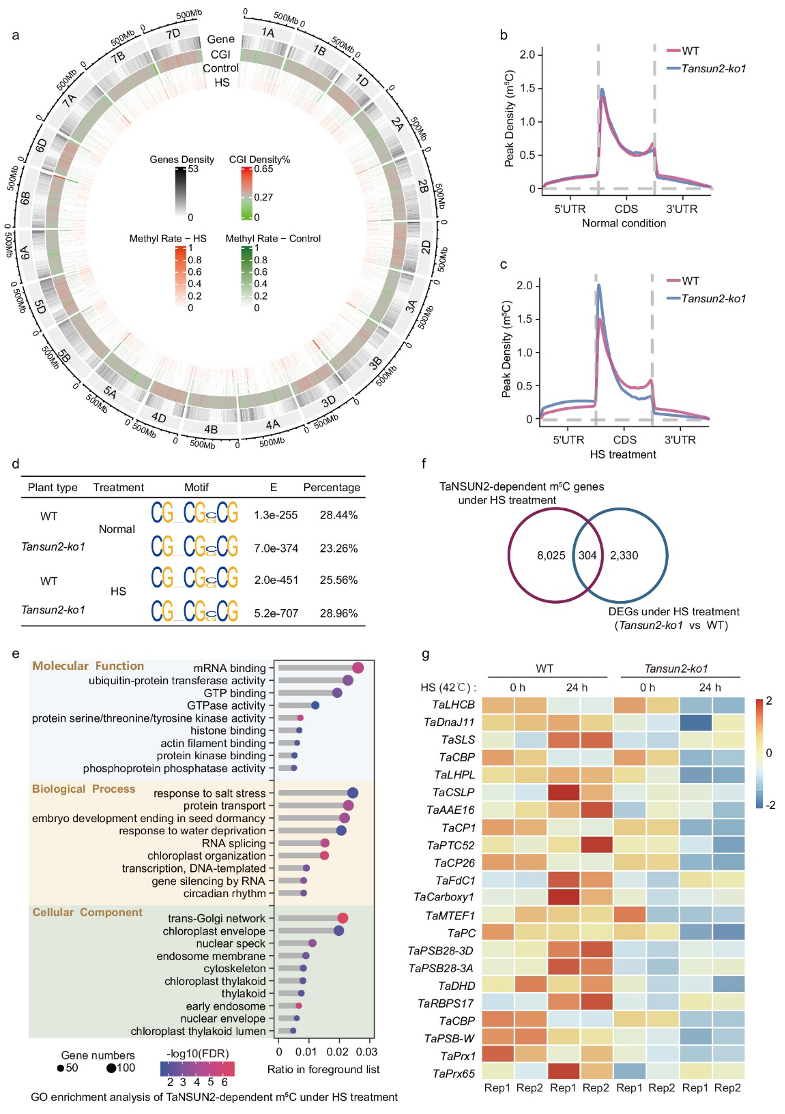
a. RNA-Bis揭示高温胁迫下m5C修饰图谱与动态变化。
b-c. 正常条件和高温胁迫处理下野生型与Tansun2-ko1中m5C位点沿mRNA转录本的分布。
d. m5C peaks的motif分析。
e. TaNSUN2依赖性m5C mRNA的GO分析。
f. 高温胁迫下Tansun2-ko1的TaNSUN2依赖性m5C基因与DEGs共有基因维恩图。
g. 正常条件和高温胁迫处理下TaNSUN2候选靶基因转录变化热图。
(7)TaNSUN2通过m5C依赖性稳定核心转录本维持叶绿体稳态
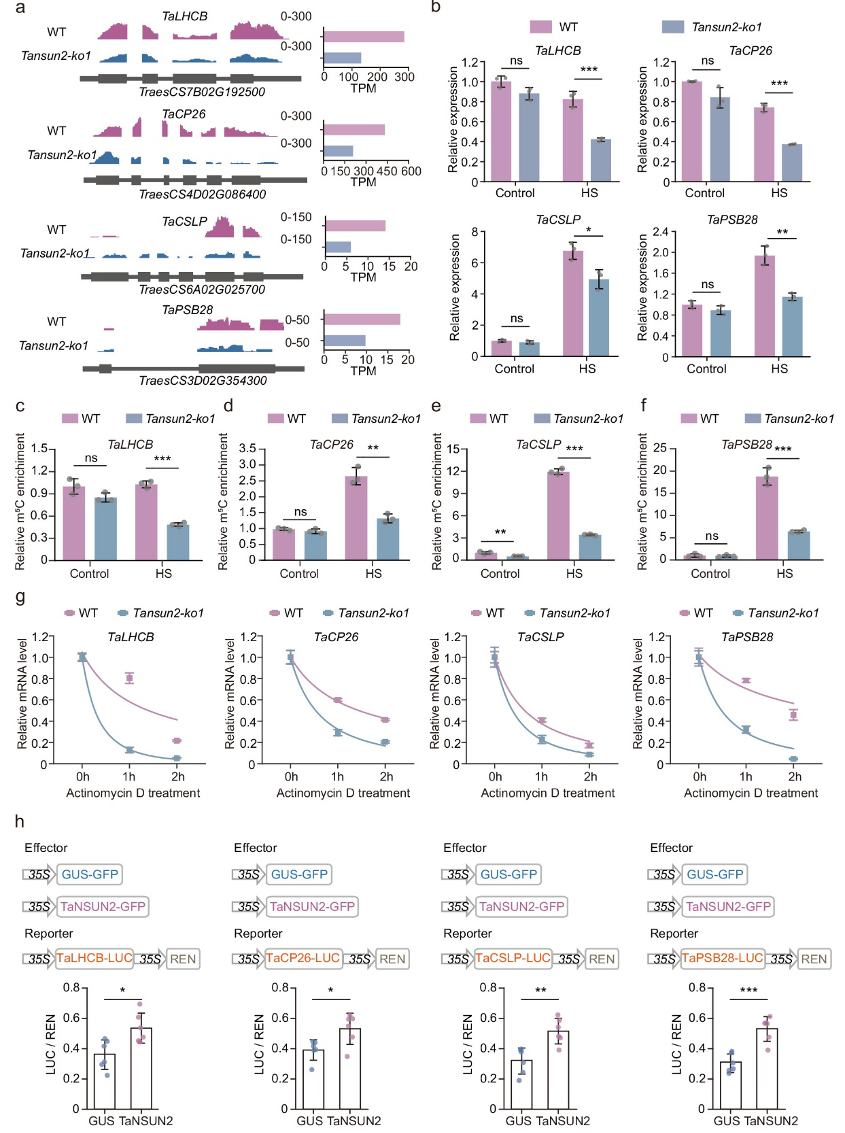
图7:TaNSUN2介导m5C修饰对小麦叶绿体组织相关基因的功能。
a. 高温胁迫下m5C-RIP-seq的叶绿体相关基因(TaLHCB、TaCP26、TaCSLP和TaPSB28)m5C reads IGV视图。
b. qRT-PCR检测野生型和Tansun2-ko1在对照和高温胁迫条件下叶片组织中叶绿体组织相关基因的相对表达水平。
c-f. 在野生型和Tansun2-ko1中,对叶绿体组织相关转录本进行抗m5C-RIP-qPCR分析。
g. 野生型和Tansun2-ko1中叶绿体组织相关基因的RNA降解曲线。
h. 双荧光素酶报告基因实验评估m5C修饰对叶绿体组织相关基因转录活性的作用。
(8)田间实验中TaNSUN2具有小麦高温抗性
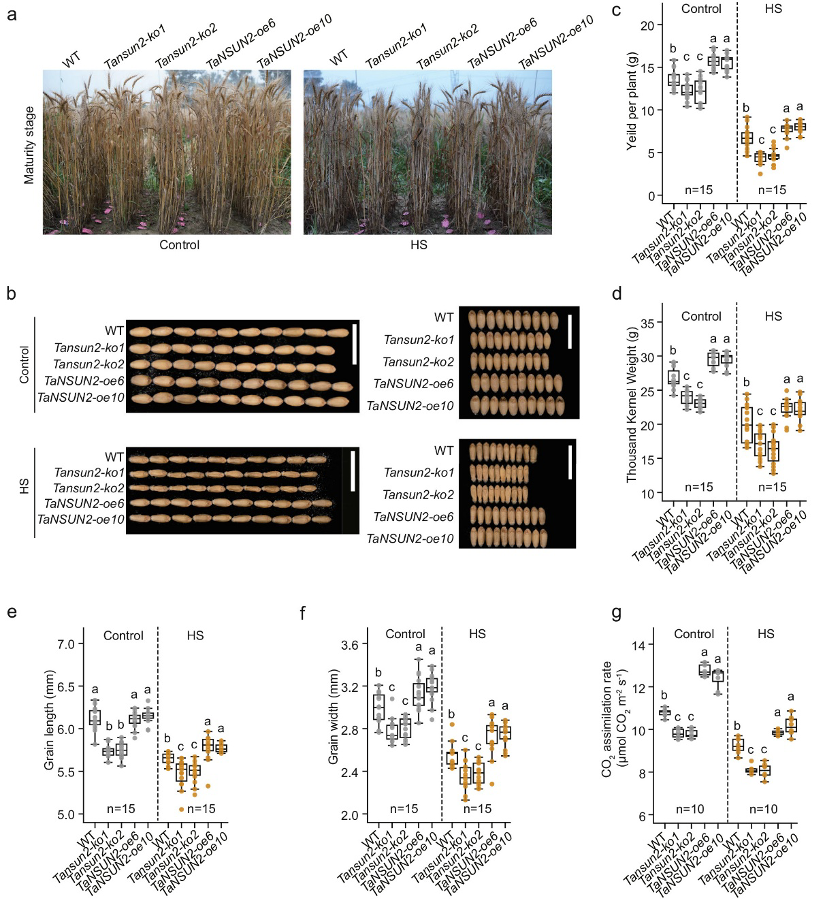
图8:TaNSUN2过表达减少高温胁迫下的产量损失。
a. 成熟期TaNSUN2转基因小麦株系响应高温胁迫的表型。
b. 正常条件(对照)和高温胁迫下野生型与TaNSUN2转基因小麦的籽粒大小。
c-g. 野生型和TaNSUN2转基因小麦单株产量(c)、千粒重(d)、粒长(e)、粒宽(f)及光合速率(g)的统计分析。
结论和启示
本研究通过CUT&Tag、RNA-Bis、m5C-RIP-seq、RNA-seq等多组学测序及验证实验揭示了小麦中TaHAG1-TaNSUN2表观基因组-表观转录组互作网络在高温抗性中的关键作用。
证明组蛋白乙酰转移酶TaHAG1通过H3K9Ac直接激活m5C甲基转移酶基因TaNSUN2,建立从染色质修饰到RNA修饰的层级调控通路。
TaE2F1-TaDP1作为转录因子异二聚体,不仅直接结合TaNSUN2启动子,还招募TaHAG1形成功能性三元复合体,协同调控转录激活。
依托RNA-Bis等高通量技术,证实TaNSUN2介导的m5C修饰主要在mRNA起始密码子区富集,通过稳定叶绿体组织核心转录本(如TaLHCB、TaCP26、TaCSLP、TaPSB28)维持光合效率。
田间试验证实TaNSUN2过表达可在正常条件下提高产量,在高温胁迫下显著减轻产量损失,是培育高温抗性小麦的理想分子靶点。


